지방세포가 커질수록 미토콘드리아도 지칩니다
지방세포는 남는 에너지를 지방으로 저장합니다. 에너지가 계속 들어오면 지방세포는 점점 커지고, 세포 안에서 처리해야 할 지방도 많아집니다. 이 부담이 몰리는 곳 중 하나가 미토콘드리아입니다.
미토콘드리아는 지방을 태우기만 하는 것이 아니라, 지방세포가 에너지를 저장하고 꺼내 쓰는 과정도 조절합니다. 들어오는 영양분이 처리 능력을 계속 넘어서면 미토콘드리아의 기능이 떨어지고 활성산소가 늘어납니다.
음식에서 들어온 포도당과 지방산은 미토콘드리아에 전자를 공급합니다. 이 전자는 미토콘드리아 안쪽 막에 있는 전자전달계를 지나 산소로 전달되고, 그 힘으로 ATP가 만들어집니다. 영양분이 계속 밀려들면 전자전달계에 전자가 몰리고 막전위가 지나치게 높아집니다. 이때 일부 전자가 경로를 벗어나 산소와 반응하면서 미토콘드리아 활성산소가 생깁니다.
평소에는 항산화 효소가 이 활성산소를 처리합니다. 그러나 생성 속도가 처리 속도를 넘으면 미토콘드리아의 막과 단백질, DNA가 손상됩니다. 손상된 미토콘드리아를 골라 없애는 미토파지도 밀려드는 손상을 따라가지 못하면서 기능이 나쁜 미토콘드리아가 지방세포 안에 쌓입니다.
손상된 미토콘드리아가 염증의 시작점이 됩니다
건강한 미토콘드리아의 DNA는 이중막 안에 갇혀 있습니다. 하지만 활성산소가 막과 DNA를 손상시키면 미토콘드리아 DNA가 세포질로 빠져나올 수 있습니다.
세포질의 cGAS라는 단백질이 이 DNA를 붙잡으면 cGAMP라는 신호 물질이 만들어집니다. cGAMP는 소포체 막에 있는 STING을 켜고, STING은 NF-κB와 IRF3로 신호를 전달합니다. 그 결과 지방세포는 염증 물질과 면역세포를 불러들이는 신호를 내보냅니다.
실제 동물실험에서도 지방세포의 미토콘드리아 DNA 유출을 늘리자 지방조직의 염증과 인슐린 저항성이 증가했고, 반대로 미토콘드리아를 보호하자 이 반응이 줄었습니다.
미토콘드리아의 손상이 심해져 지방세포가 죽으면 대식세포가 그 주변을 둘러쌉니다. 현미경에서 왕관처럼 보이기 때문에 왕관 모양 구조 (crown-like structure)라고 부릅니다. 대식세포는 남은 지방방울과 단백질, DNA, 미토콘드리아 잔해를 치웁니다. 이런 청소가 계속되면 지방조직의 염증도 오래 이어집니다.
LPS는 대식세포의 미토콘드리아를 바꿉니다
여기에 장에서 온 LPS가 더해질 수 있습니다. LPS는 일부 장내 세균의 바깥막 성분입니다. 장벽을 넘어 혈액으로 들어온 소량의 LPS가 지방조직에 도착하면 대식세포가 이를 감지합니다.
먼저 LPS가 대식세포 표면의 TLR4에 붙으면 MyD88–IKK–NF-κB 신호가 이어집니다. 이 신호는 염증 물질의 재료인 pro-IL-1β와 염증 조립 장치인 NLRP3를 미리 만들어 놓습니다.
동시에 대식세포는 에너지를 만드는 방식도 바꿉니다. 평소처럼 미토콘드리아에서 연료를 끝까지 태우기보다 포도당을 빠르게 분해하고, 미토콘드리아의 TCA 회로를 염증 반응에 맞게 재편합니다. 이 과정에서 숙신산이라는 대사산물이 쌓입니다.
숙신산은 미토콘드리아 복합체 II에서 산화되면서 막전위를 높입니다. 그러면 전자가 복합체 I 쪽으로 거꾸로 흐르는 역전자전달이 일어나고, 복합체 I에서 활성산소가 급증합니다. 미토콘드리아가 ATP 생산보다 염증용 활성산소 생산에 더 많이 동원되는 것입니다.
이 활성산소와 손상 신호가 더해지면 NLRP3, ASC, caspase-1이 모여 NLRP3 인플라마좀을 만듭니다. Caspase-1은 미리 준비된 pro-IL-1β와 pro-IL-18을 잘라 활성형 IL-1β와 IL-18로 바꿉니다. 이렇게 LPS의 표면 신호와 미토콘드리아의 내부 신호가 만나 염증 반응이 완성됩니다.
염증은 다시 지방의 흐름을 바꿉니다
미토콘드리아에서 시작된 위험 신호와 대식세포가 만든 TNF-α, IL-1β는 지방세포의 JNK와 IKKβ를 자극합니다. 이 효소들은 인슐린 수용체에서 출발한 신호를 IRS 단백질이 다음 단계로 전달하지 못하게 만듭니다.
정상적인 지방세포에서는 인슐린 신호가 PI3K를 거쳐 지방분해를 억제합니다. 이 과정에서 PDE3B가 지방분해 신호인 cAMP를 낮추고, 지방방울 주변의 PKA와 호르몬민감성지방분해효소(HSL)의 작동이 억제됩니다. 인슐린 저항성이 생기면 이 제동 장치가 약해져 저장된 중성지방이 지방산과 글리세롤로 더 많이 분해됩니다.
혈액으로 나온 지방산은 간과 근육으로 들어가 지방산 아실-CoA가 됩니다. 미토콘드리아가 이를 충분히 태우지 못하면 일부는 중성지방으로 저장되고, 일부는 DAG와 세라마이드 같은 중간물질로 남습니다.
간에서는 DAG가 PKCε를 켜 인슐린 수용체의 작동을 방해합니다. 근육에서는 DAG와 세라마이드가 IRS–PI3K–AKT 신호와 GLUT4 이동을 막아 포도당 흡수를 떨어뜨립니다. 단순히 지방이 보관된 것보다, 지방 유입량이 처리 능력을 넘으면서 이런 중간물질이 쌓이는 것이 문제입니다.
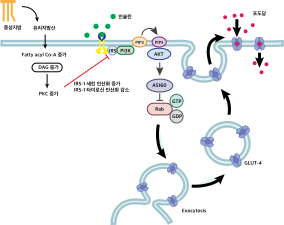
이렇게 지방세포에서 시작된 미토콘드리아 문제가 대식세포를 거쳐 간과 근육으로 번집니다. 비만에서 나타나는 만성 염증과 인슐린 저항성이 서로를 강화하는 과정입니다.
LPS를 줄이면 이 악순환을 약하게 만들 수 있습니다
LPS를 줄인다고 이미 쌓인 지방이 저절로 빠지지는 않습니다. 체지방을 줄이려면 섭취와 소비의 균형을 바꾸어 에너지 적자를 만들어야 합니다. 이 과정에는 식사 조절뿐 아니라 운동, 약물치료와 비만대사수술도 개인의 상태에 따라 이용될 수 있습니다.
장 유래 LPS 자극이 낮아지면 TLR4–NF-κB 신호와 대식세포의 염증 부담도 약해질 가능성이 있습니다. 그 결과 NLRP3 인플라마좀과 IL-1β 신호가 줄면 지방세포의 인슐린 신호와 지방분해 제동 장치가 작동하기 쉬운 환경이 만들어질 수 있습니다.
그 결과 지방산이 간과 근육으로 과도하게 흘러가는 악순환도 약해질 수 있습니다. 따라서 LPS와 장 장벽을 겨냥하는 접근은 체중을 직접 줄이는 방법이라기보다, 식사·운동·치료와 함께 염증과 인슐린 저항성의 부담을 낮추는 보조 전략으로 연구되고 있습니다.
미토콘드리아는 비만 때문에 망가지기만 하는 기관이 아닙니다. 지방세포의 영양 과잉을 염증 신호로 바꾸고, 대식세포의 반응을 키우고, 인슐린 저항성을 다른 장기로 퍼뜨리는 연결점입니다.
참고문헌
- Cani PD, et al. Metabolic endotoxemia initiates obesity and insulin resistance. Diabetes. 2007;56:1761–1772. https://doi.org/10.2337/db06-1491
- Tannahill GM, et al. Succinate is an inflammatory signal that induces IL-1β through HIF-1α. Nature. 2013;496:238–242. https://doi.org/10.1038/nature11986
- Bai J, et al. DsbA-L prevents obesity-induced inflammation and insulin resistance by suppressing the mtDNA release-activated cGAS-cGAMP-STING pathway. Proceedings of the National Academy of Sciences. 2017;114:12196–12201. https://doi.org/10.1073/pnas.1708744114
- Cinti S, et al. Adipocyte death defines macrophage localization and function in adipose tissue of obese mice and humans. Journal of Lipid Research. 2005;46:2347–2355. https://doi.org/10.1194/jlr.M500294-JLR200
- Donnelly KL, et al. Sources of fatty acids stored in liver and secreted via lipoproteins in patients with nonalcoholic fatty liver disease. Journal of Clinical Investigation. 2005;115:1343–1351. https://doi.org/10.1172/JCI23621
- Mills EL, et al. Succinate dehydrogenase supports metabolic repurposing of mitochondria to drive inflammatory macrophages. Cell. 2016;167:457–470.e13. https://doi.org/10.1016/j.cell.2016.08.064
- Choi SM, et al. Insulin regulates adipocyte lipolysis via an Akt-independent signaling pathway. Molecular and Cellular Biology. 2010;30:5009–5020. https://doi.org/10.1128/MCB.00797-10
- Samuel VT, et al. Inhibition of protein kinase Cε prevents hepatic insulin resistance in nonalcoholic fatty liver disease. Journal of Clinical Investigation. 2007;117:739–745. https://doi.org/10.1172/JCI30400